

Telomerase


Trainier deine Lernmuskeln!
Mit Flash Cards, Quiz und mehr
Loslegenvon griechisch: telos - ende; meros - Teil
Englisch: telomerase, telomere terminal transferase
Definition
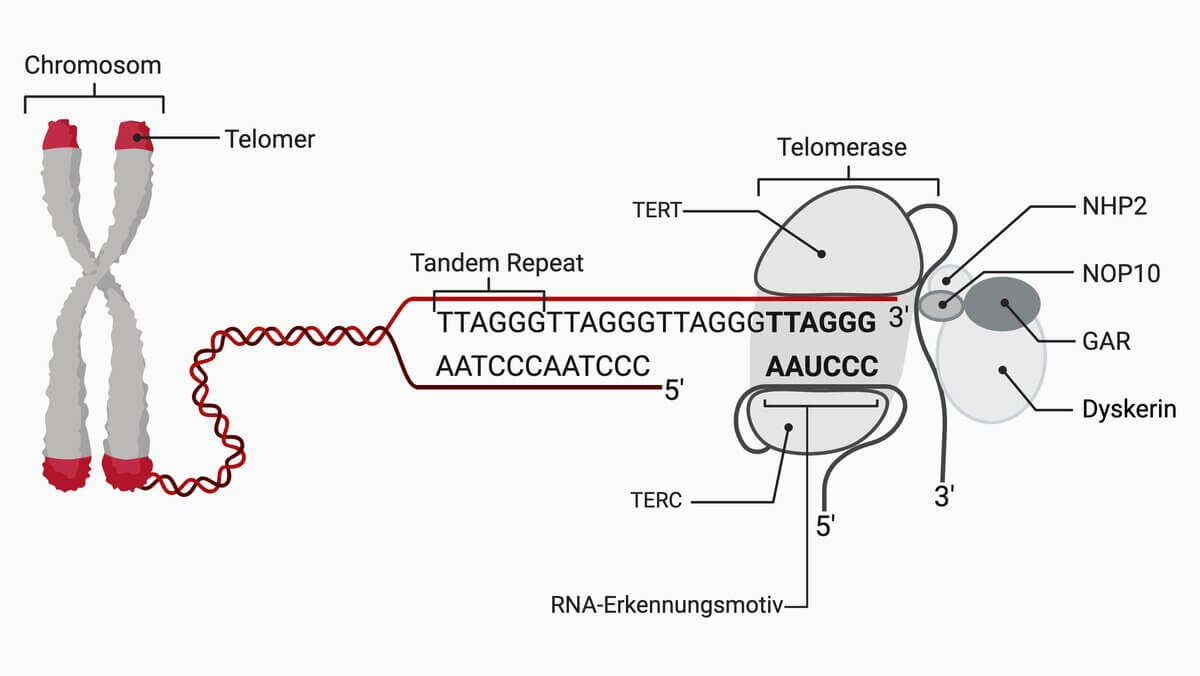
Die Telomerase ist ein Ribonukleoprotein-Enzym mit reverser Transkriptase-Aktivität, das an die Enden der Chromosomen (Telomere) repetitive DNA-Sequenzen anfügt. Sie wirkt damit der replikationsbedingten Telomerverkürzung entgegen.
Geschichte
Hayflick und Moorhead beschrieben 1961, dass sich normale menschliche Fibroblasten in Kultur nur etwa 40- bis 60-mal teilen und anschließend in Seneszenz übergehen (Hayflick-Grenze).[1] Olovnikov führte dies 1971 in seiner Marginotomie-Hypothese auf das unvollständige Kopieren der Chromosomenenden zurück und sagte ein Enzym zur Telomerverlängerung voraus.[2] 1985 wiesen Greider und Blackburn in Extrakten des Wimpertierchens Tetrahymena erstmals eine Aktivität nach, die telomerische Repeats an DNA-Enden anfügt, und bezeichneten sie als "Telomer-terminale Transferase".[3] Elizabeth Blackburn, Carol Greider und Jack Szostak erhielten 2009 den Nobelpreis für Physiologie oder Medizin für die Aufklärung des Schutzes der Chromosomen durch Telomere und Telomerase.
Aufbau
Der menschliche Telomerasekomplex besteht aus einer katalytischen Proteinuntereinheit, einer RNA-Komponente und mehreren assoziierten Proteinen:[4]
| Komponente | Funktion |
|---|---|
| TERT (Telomerase Reverse Transkriptase) | katalytische Untereinheit mit reverser Transkriptase-Aktivität |
| TERC (Telomerase-RNA, hTR) | enthält die Schablonensequenz für die Repeat-Synthese |
| Dyskerin (DKC1), NHP2, NOP10, GAR1 | H/ACA-Ribonukleoproteine, Stabilisierung und Reifung von TERC |
| TCAB1 (WRAP53) | Transport der Telomerase in die Cajal-Körperchen und zu den Telomeren |
Mutationen in diesen Komponenten beeinträchtigen die Aktivität, die Reifung oder die Stabilität der Telomerase.[5]
Funktion
Endreplikationsproblem
Während der DNA-Replikation in der S-Phase benötigt die DNA-Polymerase am Folgestrang für jedes Okazaki-Fragment einen RNA-Primer, der von der Primase synthetisiert wird. Nach Entfernung des letzten Primers am Chromosomenende bleibt eine Lücke, die nicht aufgefüllt werden kann. Die Telomere verkürzen sich daher mit jeder Zellteilung.
Katalysezyklus
Menschliche Telomere bestehen aus 10–15 kb doppelsträngiger TTAGGG-Repeat-DNA und enden in einem einzelsträngigen, G-reichen 3'-Überhang.[5] Die Telomerase wird über das Shelterin-Protein TPP1 an die Telomere rekrutiert. Die Interaktion von TPP1 mit TERT steigert zudem die Prozessivität des Enzyms.[6]
Der Katalysezyklus läuft in folgenden Schritten ab:
- Die Schablonenregion von TERC lagert sich komplementär an das 3'-Ende des G-Überhangs an.
- TERT verlängert das 3'-Ende entsprechend der RNA-Schablone um eine TTAGGG-Sequenz (bei Vertebraten).
- Das Enzym verschiebt sich und fügt weitere Repeats an.
Anschließend wird der komplementäre C-reiche Strang durch Polymerase α-Primase aufgefüllt. Da die Telomerase RNA als Vorlage für die DNA-Synthese nutzt, gehört sie zu den reversen Transkriptasen.
Vorkommen
In den meisten somatischen Zellen des Menschen ist die Telomerase-Aktivität sehr gering oder nicht nachweisbar. Aktiv ist sie v.a. in:
- Keimbahnzellen
- embryonalen und adulten Stammzellen, z.B. hämatopoetischen Vorläuferzellen im Knochenmark
- aktivierten Lymphozyten
- der Mehrzahl der Krebszellen
Einzellige Eukaryoten wie Tetrahymena oder Hefen exprimieren die Telomerase konstitutiv.
Regulation
Die Transkription des TERT-Gens ist der limitierende Faktor der Telomerase-Aktivität. In Tumoren wird TERT häufig durch somatische Mutationen im Promotor aktiviert. Die beiden Hotspot-Mutationen erzeugen neue Bindemotive für ETS-Transkriptionsfaktoren und wurden erstmals bei 71 % der Melanome nachgewiesen.[7] Besonders häufig sind sie außerdem beim Glioblastom und beim Urothelkarzinom.
Auch die DNA-Schadensantwort reguliert die Telomerase. In Hefe verhindert eine vom ATR-Ortholog Mec1 abhängige Phosphorylierung der Helikase Pif1, dass die Telomerase an DNA-Doppelstrangbrüchen fälschlich Telomere anfügt. An den natürlichen Chromosomenenden wirkt diese Hemmung nicht.[8] Ob dieser Mechanismus beim Menschen konserviert ist, ist bisher (2026) nicht geklärt.
Klinik
Telomeropathien
Keimbahnmutationen in Genen der Telomerase oder ihrer Reifung, z.B. TERT, TERC, DKC1, NHP2, NOP10, WRAP53 oder PARN, führen zu pathologisch kurzen Telomeren.[5] Sie verursachen Telomeropathien wie die Dyskeratosis congenita, aplastische Anämie oder familiäre Lungenfibrose.
Tumorbiologie
Die Reaktivierung der Telomerase ermöglicht Tumorzellen eine unbegrenzte Teilungsfähigkeit und gilt als Kennzeichen maligner Transformation. Ein kleinerer Teil der Tumoren erhält die Telomere telomeraseunabhängig über Alternative Lengthening of Telomeres (ALT).
Therapie
Mit Imetelstat ist in der EU seit März 2025 der erste Telomerase-Inhibitor zugelassen, und zwar zur Behandlung der transfusionsabhängigen Anämie bei myelodysplastischen Syndromen niedrigen Risikos.[9]
Forschung
Umgekehrt wird untersucht, ob eine Steigerung der Telomerase-Aktivität das Altern verlangsamen kann (Anti-Aging-Medizin).
Cave: Keimbahnvarianten, die zu überlangen Telomeren führen, sind mit einer Krebsprädisposition assoziiert. Eine therapeutische Telomerase-Aktivierung birgt daher ein potenzielles onkogenes Risiko.[10]
Quellen
- ↑ Hayflick L, Moorhead PS. The serial cultivation of human diploid cell strains. Exp Cell Res. 1961;25:585-621.
- ↑ Olovnikov AM. Principle of marginotomy in template synthesis of polynucleotides [Russisch]. Dokl Akad Nauk SSSR. 1971;201(6):1496-1499.
- ↑ Greider CW, Blackburn EH. Identification of a specific telomere terminal transferase activity in Tetrahymena extracts. Cell. 1985;43(2 Pt 1):405-413.
- ↑ Savage SA, Bertuch AA. The genetics and clinical manifestations of telomere biology disorders. Genet Med. 2010;12(12):753-764.
- ↑ 5,0 5,1 5,2 Grill S, Nandakumar J. Molecular mechanisms of telomere biology disorders. J Biol Chem. 2021;296:100064.
- ↑ Bertuch AA. The molecular genetics of the telomere biology disorders. RNA Biol. 2016;13(8):696-706.
- ↑ Huang FW et al. Highly recurrent TERT promoter mutations in human melanoma. Science. 2013;339(6122):957-959.
- ↑ Makovets S, Blackburn EH. DNA damage signalling prevents deleterious telomere addition at DNA breaks. Nat Cell Biol. 2009;11(11):1383-1386.
- ↑ European Medicines Agency. Rytelo (imetelstat): EPAR. Abgerufen am 30.09.2026.
- ↑ Savage SA, Bertuch AA. Different phenotypes with different endings – Telomere biology disorders and cancer predisposition with long telomeres. Br J Haematol. 2025;206(1):69-73. Epub 2024.